
 English
 Español


Hay un cajón en la mayoría de las grandes colecciones de historia natural que los visitantes nunca llegan a abrir. Contiene báculos —huesos peneanos— ordenados por especies, etiquetados con caligrafía inglesa y discretamente asombrosos. El de una comadreja es una astilla en forma de gancho. El de un mapache parece una pequeña aguja de ganchillo.
Un espécimen de morsa en el Museo Grant de la UCL mide 66 cm (26 in), y la morsa ostenta el récord verificado del báculo de mamífero más largo con 75 cm (29,5 in), aproximadamente la longitud de un fémur humano, según Guinness World Records.
Luego llegas a la bandeja de Homo sapiens y no hay nada en ella. No porque un conservador lo haya extraviado, sino porque no hay nada que recolectar. Los seres humanos pertenecemos a un reducido grupo de mamíferos que no desarrollan ningún hueso allí, un hecho que se suma a otras particularidades que distinguen a la anatomía genital humana entre los primates y que ha generado un cuerpo de investigación publicada realmente fascinante.
Qué es un báculo y qué no es
El báculo, también llamado os penis u os priapi, es un hueso ubicado dentro del tejido del pene que no está conectado con el resto del esqueleto. Se desarrolla a partir de tejido conectivo en lugar de formarse como parte del esqueleto axial o apendicular, motivo por el cual se comporta de manera tan impredecible entre las distintas especies. Brassey y sus colaboradores, en un artículo publicado en Proceedings of the Royal Society B, lo describen como uno de los huesos más variables del cuerpo de los mamíferos y señalan que se ha documentado en nueve órdenes modernos: primates, carnívoros, roedores, murciélagos, erizos, musarañas y topos, colugos, tenrecs y topos dorados, y —reciente e inesperadamente— la pica americana.
Conviene hacer dos aclaraciones antes de continuar. En primer lugar, un mamífero sin báculo no es un mamífero sin una erección funcional. En las especies que carecen de este hueso, la erección se logra por vía hidráulica, únicamente mediante presión sanguínea. En segundo lugar, no se trata de una estructura exclusiva de los machos. Las hembras de muchas de estas mismas especies poseen un hueso homólogo en el clítoris, denominado baubellum u os clitoridis. Homólogo significa que ambas estructuras comparten un origen del desarrollo y evolutivo: son la misma pieza construida en dos configuraciones distintas, lo cual es exactamente lo esperable dado que la anatomía genital masculina y femenina se desarrolla a partir de una misma plantilla fetal compartida.
El lugar del hueso en el árbol genealógico de los mamíferos
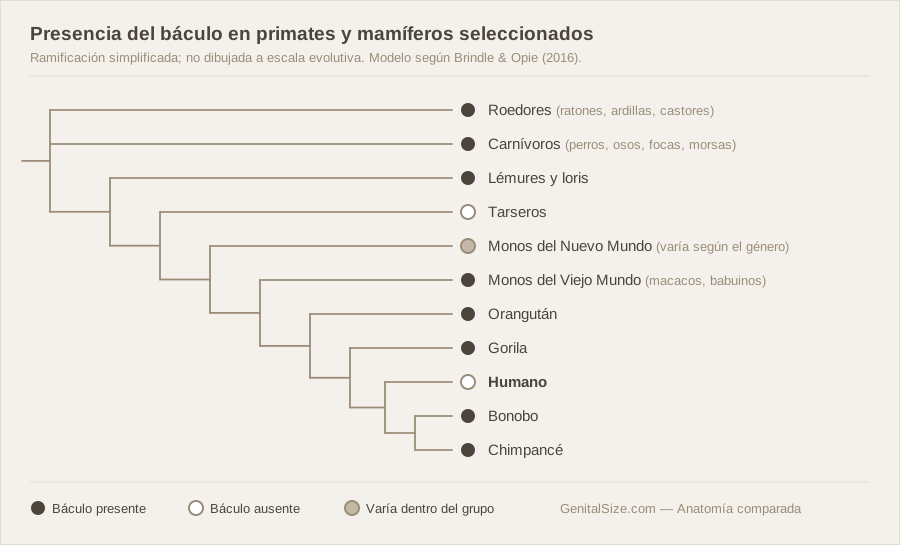
He aquí la parte que sorprende a la mayoría de los lectores: el báculo no es una herencia ancestral única que unos pocos linajes hayan perdido por azar. Al reconstruir su historia mediante métodos filogenéticos bayesianos, Brindle y Opie estimaron que esta estructura ha surgido de forma independiente en al menos nueve ocasiones a lo largo de la evolución de los mamíferos placentarios, y que también se ha perdido repetidamente. Esto lo convierte en un caso de estudio sobre convergencia evolutiva: diferentes linajes que llegaron a una solución similar a partir de puntos de partida distintos.
Dentro de los primates, su distribución es discontinua de una manera muy reveladora. Los estrepsirrinos como los lémures y los loris lo poseen. Los monos del Viejo Mundo lo tienen. Los chimpancés, bonobos y gorilas también lo tienen, aunque en los grandes simios es sorprendentemente pequeño: apenas unos milímetros de hueso en lugar de la sólida varilla que se observa en muchos carnívoros. Los tarseros carecen de él. Varias especies de monos del Nuevo Mundo no lo tienen. Y los humanos carecemos por completo de él, al igual que los neandertales y los denisovanos, según indican los registros genéticos y esqueléticos.
La selección sexual en lenguaje sencillo
Casi todas las explicaciones publicadas sobre la anatomía genital recurren a la selección sexual, por lo que conviene definir los términos antes de utilizarlos.
La selección sexual describe aquellos rasgos que se extienden porque mejoran el éxito reproductivo en lugar de la supervivencia. Posee dos componentes clásicos. La competencia entre machos abarca los rasgos que ayudan a los machos a competir con otros machos: tamaño corporal, armas naturales, resistencia. La elección femenina abarca los rasgos que se propagan porque las hembras se aparean preferentemente con los machos que los exhiben.
La competencia espermática extiende esta misma lógica más allá del momento del apareamiento. Cuando las hembras de una especie se aparean con más de un macho dentro de una misma ventana fértil, los espermatozoides de los machos rivales terminan compitiendo dentro del tracto reproductivo femenino. La selección favorece entonces a los machos capaces de depositar más esperma o espermatozoides de mejor calidad. Esta idea fue formalizada por primera vez por Geoff Parker en 1970 a partir de sus trabajos con insectos, y desde entonces se ha aplicado a todo el reino animal.
La proporción operativa de sexos es la relación entre los machos listos para aparearse y las hembras fértiles en una población en un momento dado. Cuando esa proporción se inclina notablemente hacia los machos, la competencia se intensifica y los rasgos favorecidos por la selección sexual se vuelven más extremos.
Tenga en cuenta estos cuatro términos. Cada una de las hipótesis expuestas a continuación se fundamenta en ellos.
El hueso no es una curiosidad del pasado remoto. Ha sido inventado y abandonado en repetidas ocasiones, lo que significa que su presencia o ausencia nos dice algo acerca de cómo se aparea una especie.
Cuál parece ser la función del hueso
La principal explicación funcional es la hipótesis de la intromisión prolongada. Dixson y sus colaboradores describieron una relación positiva entre la longitud del báculo y los patrones de cópula prolongada en los mamíferos, y Brindle y Opie lo comprobaron formalmente dentro de un marco filogenético en un trabajo publicado en Proceedings of the Royal Society B. Su análisis halló que la intromisión prolongada —que definieron como una penetración que dura más de tres minutos— se correlacionaba con la presencia de un báculo a lo largo de la evolución de los primates, y predecía un hueso más largo tanto en primates como en carnívoros. Los niveles más altos de competencia poscopulatoria entre machos también se asociaron con báculos más largos en los primates.
El respaldo independiente llega desde un ángulo poco habitual. Brassey y su equipo realizaron análisis de elementos finitos —un software de ingeniería para pruebas de esfuerzo aplicado a los báculos de carnívoros— y presentaron resultados coherentes con esta misma hipótesis, añadiendo que el hueso también puede servir para proteger la uretra durante una cópula prolongada.
El panorama funcional, por lo tanto, es el de un soporte estructural para apareamientos prolongados bajo carga mecánica, en especies donde los machos afrontan una severa competencia tanto antes como después de la cópula.
Cuatro explicaciones publicadas para su ausencia en humanos
¿Por qué, entonces, los humanos no tenemos hueso peneano? En la literatura científica figuran varias hipótesis, que además no son mutuamente excluyentes.
1. Un cambio en el sistema de apareamiento
Kit Opie, coautor del estudio de la Royal Society de 2016, ha sugerido que tras la separación del linaje humano de chimpancés y bonobos y el cambio de los patrones de apareamiento hacia la monogamia —probablemente hace más de dos millones de años—, las presiones evolutivas que mantenían el hueso probablemente desaparecieron. Cuando un macho no compite con el esperma de varios rivales, la ventaja de poseer una estructura ósea que soporte cópulas prolongadas se desvanece.
2. Duración de la cópula
Esta es la versión mecánicamente específica del mismo argumento. El umbral de tres minutos identificado por Brindle y Opie se sitúa por encima de la duración típica de la intromisión humana reportada en la literatura conductual. Desde esta perspectiva, los humanos nos encontramos en el lado de la línea donde el hueso no aporta ninguna ventaja medible, y las estructuras que no confieren ventajas tienden a no conservarse.
3. Suficiencia hidráulica
La erección humana está impulsada enteramente por la presión sanguínea, y el pene humano es grande en relación con la masa corporal en comparación con el de otros grandes simios. Una línea de argumentación sostiene que un órgano lo suficientemente grande y bien vascularizado hace que el refuerzo esquelético sea redundante. Esta hipótesis es más difícil de contrastar que las dos primeras, ya que predice una ausencia en lugar de una correlación cuantificable, por lo que debe abordarse con mayor cautela.
4. Genética reguladora
La evidencia molecular más concreta se refiere a una estructura relacionada más que al hueso en sí. McLean y sus colaboradores, en un artículo publicado en Nature, identificaron un conjunto de secuencias de ADN altamente conservadas que fueron suprimidas específicamente en los humanos. Una de ellas elimina un potenciador cercano al gen del receptor de andrógenos que impulsa el desarrollo de vibrisas sensoriales y espinas peneanas queratinizadas: pequeñas proyecciones superficiales presentes en chimpancés, macacos y muchos otros mamíferos, pero ausentes en los humanos. Reno y sus colegas confirmaron posteriormente que este potenciador falta tanto en los humanos modernos como en los genomas neandertal y denisovano, mientras que sigue presente en chimpancés, bonobos y otros primates que conservan dichas estructuras.
Este hallazgo no explica de forma directa la ausencia del hueso. No obstante, establece un hecho más amplio: la anatomía genital humana ha sido remodelada por deleciones identificables en el ADN regulador, y la simplificación de esta estructura parece haber ocurrido en más de un frente. Los propios autores advierten con cautela de que la deleción podría haber sido consecuencia del cambio anatómico y no su causa.
| Grupo | Báculo | Notas |
|---|---|---|
| Morsa, focas, osos, cánidos | Presente | El mayor documentado corresponde a la morsa, verificado en 75 cm (29,5 in) |
| Roedores, murciélagos, musarañas, topos | Presente | A menudo inferior a un milímetro; la forma varía drásticamente entre especies emparentadas |
| Pica americana | Presente | Reportado recientemente; el primer lagomorfo confirmado |
| Lémures, loris, monos del Viejo Mundo | Presente | La longitud se correlaciona con la duración de la cópula en análisis comparativos |
| Chimpancé, bonobo, gorila, orangután | Presente, pequeño | Unos pocos milímetros de hueso, mucho más corto que en carnívoros de tamaño similar |
| Tarseros, varias especies de monos del Nuevo Mundo | Ausente | Pérdidas independientes dentro del orden de los primates |
| Humanos | Ausente | También ausente en neandertales y denisovanos |
| Ballenas, delfines, caballos, bovinos, elefantes | Ausente | Erección lograda sin soporte esquelético |
Compilado a partir de Brindle y Opie (2016), Brassey et al. (2018) y Guinness World Records. La distribución en los monos del Nuevo Mundo varía según el género.
Qué aporta el tamaño testicular al panorama
El báculo es una línea de evidencia. El tamaño testicular es otra, y apunta en la misma dirección.
En 1981, Harcourt, Harvey, Larson y Short publicaron un breve artículo en Nature que ha influido en este campo desde entonces. Su razonamiento era sencillo: en los chimpancés, varios machos se aparean con la misma hembra durante su período fértil, por lo que el esperma de cada macho compite con el de los demás. La selección debería favorecer al macho que deposite la mayor cantidad. En los gorilas, un único macho dominante se aparea con las hembras de su grupo y no afronta tal disputa. La predicción era clara: las especies de primates en las que las hembras se aparean con varios machos deberían tener testículos más grandes en relación con su peso corporal que las especies con sistemas de apareamiento de un solo macho. Pusieron a prueba esta premisa en una amplia gama de primates y los resultados respaldaron la hipótesis.
Los humanos nos situamos en una posición verdaderamente interesante en esa escala: muy por encima de los gorilas, pero muy por debajo de los chimpancés. No es la anatomía de una especie adaptada a una competencia espermática intensa, ni tampoco la de un sistema estricto de harén con un solo macho. Los investigadores suelen interpretar esto como compatible con un sistema de apareamiento intermedio, si bien se trata de una hipótesis sobre las presiones de selección ancestrales y no de una descripción sobre la conducta de las personas en la actualidad.
Figura 1
Masa testicular combinada como porcentaje de la masa corporal, grandes simios
Valores aproximados compilados a partir de conjuntos de datos comparativos publicados según Harcourt et al. (1981) y Dixson (2012). Las cifras exactas varían según las fuentes y las muestras; la comparación se fundamenta en la clasificación relativa y no en un valor individual aislado.
La contraparte femenina en la comparación
La anatomía genital comparada cuenta con un largo historial de estudiar a los machos y asumir que las hembras constituían la mitad sencilla de la ecuación. Dicha suposición no se ha sostenido frente a los datos. Una revisión de 2022 en Integrative and Comparative Biology argumentó lo contrario: que la variación en la anatomía genital femenina entre los mamíferos supera a la observada en los machos.
Algunos ejemplos documentados ofrecen una idea de esta diversidad. En varios géneros de monos del Nuevo Mundo, incluidos los monos araña, los monos lanudos y los capuchinos, el clítoris está notablemente agrandado; en el mono araña Ateles geoffroyi, las descripciones publicadas señalan que es más largo que el pene del macho y que presenta variaciones en longitud y coloración dentro de la misma especie. Entre los monos del Viejo Mundo y los simios, las hembras de muchas especies con múltiples machos desarrollan llamativas hinchazones sexuales en la piel anogenital alrededor de la ovulación: una señal que parece haber evolucionado de forma independiente al menos tres veces y que se manifiesta principalmente en especies donde las hembras se aparean con varios machos a lo largo de un ciclo. Diversas hipótesis en pugna interpretan estas hinchazones como un indicador fidedigno de la calidad de la hembra o como una señal gradual de fertilidad.
Los cetáceos aportan el material comparativo más sorprendente de todos. Orbach y sus colaboradores documentaron pliegues vaginales —protuberancias de la pared vaginal hacia el canal de la vagina— que variaban desde un solo pliegue en delfines mulares y comunes hasta trece en las marsopas comunes, a través de 59 tractos reproductivos examinados. En un trabajo de seguimiento mediante tomografía computarizada de especímenes de animales fallecidos, el equipo de investigación informó de que en las marsopas comunes y los delfines mulares el pliegue de mayor tamaño limita físicamente la profundidad de penetración del macho, mientras que en los delfines comunes de hocico corto y las focas comunes no existe una barrera comparable. Su conclusión fue que los genitales masculinos y femeninos en estas especies parecen haber coevolucionado estrechamente.
Este trabajo reviste una gran importancia teórica. Aporta pruebas físicas de la elección femenina críptica: la noción, desarrollada por William Eberhard y ampliamente tratada en los trabajos comparativos de primates de Alan Dixson, de que la anatomía y fisiología femeninas influyen en el éxito del esperma de un determinado macho una vez que el apareamiento ya ha tenido lugar. En otras palabras, la elección femenina no finaliza en la selección de pareja. Para los lectores que deseen conocer primero la nomenclatura y ubicación de las estructuras humanas, nuestra guía sobre anatomía genital externa femenina aborda la terminología empleada anteriormente.
Lo que la anatomía comparada puede y no puede decirnos
Conviene hacer una advertencia aquí, ya que este campo es sumamente propenso a malinterpretaciones. Las explicaciones evolutivas son fáciles de formular y difíciles de verificar. A cualquier rasgo anatómico se le puede atribuir a posteriori una historia adaptativa verosímil, y la historia de este tema específico está plagada de afirmaciones categóricas que no superaron las pruebas filogenéticas.
Tres distinciones permiten mantener el rigor en el razonamiento. Homología significa origen ancestral compartido: el báculo y el baubellum son homólogos. Analogía se refiere a una función similar a partir de orígenes diferentes: la evolución independiente y reiterada del báculo en órdenes no emparentados es analogía, no herencia. Y ancestral frente a derivado describe qué estado apareció primero, sin implicar que ninguno de los dos esté mejor diseñado. Poseer un hueso peneano no constituye una condición más primitiva en ningún sentido significativo, ni carecer de él representa una mejora. Son soluciones distintas adaptadas a presiones de selección diferentes.
Hay otra distinción que conviene expresar con claridad: el tamaño testicular relativo y la presencia del báculo son evidencias sobre las presiones de selección que moldearon un linaje a lo largo de cientos de miles de años. No constituyen pruebas sobre la conducta de ningún individuo en particular ni demuestran nada sobre cómo los seres humanos deberían llevar sus relaciones afectivas. La anatomía comparada ofrece hipótesis sobre el pasado; no emite instrucciones para el presente.
Lo que sí ofrece es una forma de leer el cuerpo como un documento histórico. El espacio vacío en ese cajón del museo no es un fallo en la colección: es el registro de algo que le ocurrió a nuestro linaje, un cambio en la manera en que nuestros antepasados se apareaban, competían y formaban parejas, grabado en la anatomía de cada ser humano vivo. Las pruebas sugieren que perdimos este hueso porque dejamos de necesitarlo. Lo cual, si uno se detiene a pensarlo, es algo verdaderamente fascinante de saber sobre nosotros mismos.
Glosario editorial
- Báculo
- Hueso situado en el interior del pene de muchos mamíferos, que se desarrolla a partir del tejido conectivo y no del esqueleto principal. También llamado os penis.
- Baubellum
- Hueso homólogo ubicado en el clítoris, también llamado os clitoridis.
- Competencia espermática
- Competencia entre los espermatozoides de diferentes machos dentro del tracto reproductivo femenino, que surge cuando las hembras se aparean con más de un macho dentro de una ventana fértil.
- Elección femenina críptica
- Influencia de la anatomía o fisiología femenina sobre el esperma del macho que logra fertilizar, la cual tiene lugar tras el apareamiento y no antes de este.
- Proporción operativa de sexos
- La relación entre machos listos para aparearse y hembras fértiles en una población en un momento determinado.
- Homología / analogía
- La homología es una estructura compartida por descendencia común. La analogía es una función similar a la que se llega de manera independiente.
Preguntas frecuentes de los lectores
Fuentes
- Brindle, M. & Opie, C. (2016). Postcopulatory sexual selection influences baculum evolution in primates and carnivores. Proceedings of the Royal Society B, 283: 20161736.
- Harcourt, A. H., Harvey, P. H., Larson, S. G. & Short, R. V. (1981). Testis weight, body weight and breeding system in primates. Nature, 293: 55–57.
- Brassey, C. A., Behnsen, J. & Gardiner, J. D. (2018). Testing hypotheses for the function of the carnivoran baculum using finite-element analysis. Proceedings of the Royal Society B.
- McLean, C. Y., Reno, P. L., Pollen, A. A. et al. (2011). Human-specific loss of regulatory DNA and the evolution of human-specific traits. Nature, 471: 216–219.
- Reno, P. L. et al. (2013). A penile spine/vibrissa enhancer sequence is missing in modern and extinct humans but is retained in multiple primates. PLOS ONE.
- Dixson, A. F. (2012). Primate Sexuality: Comparative Studies of the Prosimians, Monkeys, Apes, and Humans, 2nd edn. Oxford University Press.
- Dixson, A. F., Nyholt, J. & Anderson, M. J. (2004). A positive relationship between baculum length and prolonged intromission patterns in mammals.
- Orbach, D. N., Marshall, C. D., Mesnick, S. L. & Würsig, B. (2017). Patterns of cetacean vaginal folds yield insights into functionality. PLOS ONE, 12: e0175037.
- Orbach, D. N., Kelly, D. A., Solano, M. & Brennan, P. L. R. (2017). Genital interactions during simulated copulation among marine mammals. Proceedings of the Royal Society B, 284.
- Blackburn, D. G. et al. (2022). Female genital variation far exceeds that of male genitalia. Integrative and Comparative Biology, 62(3): 581.
- Parker, G. A. (1970). Sperm competition and its evolutionary consequences in the insects. Biological Reviews, 45: 525–567.
- Gilbert, S. F. & Zevit, Z. (2001). Congenital human baculum deficiency. American Journal of Medical Genetics, 101: 284–285.
- Guinness World Records — Báculo más largo.
Aviso legal
- Todo el contenido de este sitio web, incluidos los artículos, materiales educativos y calculadoras interactivas, tiene únicamente fines informativos, educativos y de entretenimiento. Los cálculos, percentiles y resultados generados por las herramientas de este sitio se basan en datos estadísticos generales y modelos matemáticos; no constituyen datos médicos, una evaluación clínica ni un diagnóstico.
- Nada de lo contenido en este sitio web sustituye el asesoramiento, diagnóstico o tratamiento médico profesional. Consulte siempre a un profesional de la salud cualificado o a un urólogo ante cualquier pregunta que tenga sobre el desarrollo físico, la anatomía o las condiciones de salud. El uso de cualquier información o herramienta proporcionada por este sitio web es exclusivamente bajo su propia responsabilidad.