
 English
 Español


Seis semanas después de la fecundación, un embrión humano mide aproximadamente 1,2 centímetros (0,5 pulgadas) de la coronilla a la rabadilla, y no hay nada en la parte inferior de su cuerpo que permita distinguir a uno de otro. Hay una cresta de tejido que podría convertirse en un testículo o en un ovario. Hay un pequeño brote. Hay dos protuberancias a cada lado. Y, de forma inusual para un plan corporal que finalmente elegirá una sola opción, hay dos conjuntos completos de conductos internos, dispuestos uno al lado del otro, ambos completamente intactos.
Lo que sucede a continuación es una de las secuencias más ordenadas de la biología humana. A lo largo de las siguientes ocho semanas, llega una breve lista de señales hormonales en un orden fijo, cada una cumpliendo una función específica, y el material inicial compartido se transforma o se deja intacto. El artículo complementario a este, El plano compartido: cómo una plantilla fetal se convierte en masculina o femenina, aborda en qué consiste ese material inicial. Este artículo rastrea las señales: qué llega, cuándo y de qué es responsable cada una.
En resumen
- Cada embrión humano comienza con la misma gónada, el mismo pequeño brote de tejido y ambos conjuntos de conductos internos.
- Tres señales realizan la mayor parte del trabajo: la hormona antimülleriana, la testosterona y la dihidrotestosterona (DHT). Cada una tiene una función independiente.
- La vía femenina no es una opción secundaria o por defecto. Las investigaciones han identificado genes que construyen y mantienen activamente el ovario.
- El momento oportuno importa tanto como la cantidad. Varias de estas señales solo tienen efecto durante ventanas estrechas medidas en semanas.
Semanas 4 a 7: todo sigue siendo opcional
Las crestas genitales aparecen en la pared posterior del embrión entre las cuatro y cinco semanas después de la fecundación. Los biólogos del desarrollo denominan al órgano resultante gónada bipotencial, y el nombre es preciso: en esta etapa, el tejido contiene la maquinaria celular para ambos desenlaces, y los trabajos publicados sobre el desarrollo gonadal la describen como genuinamente indecisa y no meramente sin etiquetar (Wilhelm, Palmer & Koopman, Physiological Reviews, 2007).
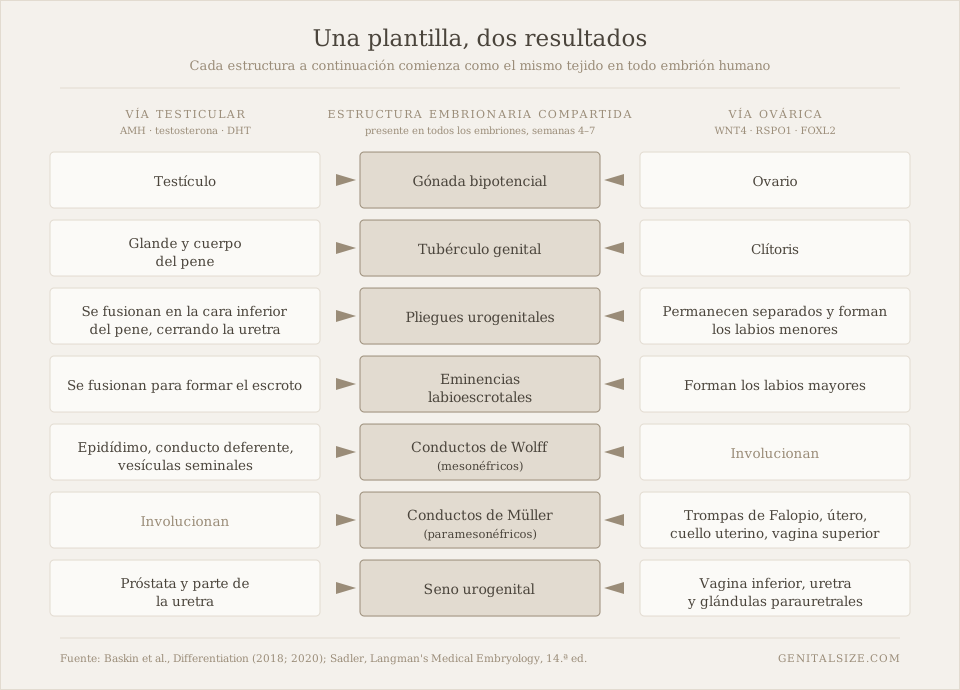
Dos pares de conductos discurren a lo largo de ella. Los conductos de Wolff, si se conservan, pueden convertirse en el epidídimo, el conducto deferente y las vesículas seminales. Los conductos de Müller, si se conservan, pueden transformarse en las trompas de Falopio, el útero, el cuello uterino y la parte superior de la vagina. Todo embrión en esta fase tiene ambos. En el exterior, tres estructuras están preparadas: el tubérculo genital, un par de pliegues urogenitales y un par de eminencias labioescrotales. Los estudios sobre el desarrollo genital externo humano indican que estas son indistinguibles entre embriones hasta aproximadamente la novena semana (Baskin et al., Differentiation, 2018).
Una precisión importante, dado que las fuentes publicadas difieren: las semanas citadas a lo largo de este artículo se cuentan a partir de la fecundación. El embarazo suele fecharse con mayor frecuencia a partir de la última menstruación, que se sitúa unas dos semanas por delante. Una estructura que aquí se describe como formada en la semana nueve corresponde aproximadamente a la semana once en un calendario de embarazo estándar.
El interruptor y los seis días posteriores
El detonante es un solo gen. En 1990, un equipo de investigación identificó el gen SRY como la región determinante del sexo en el cromosoma Y, publicando el hallazgo en Nature. Desde entonces, el trabajo en tejido humano ha situado la ventana de expresión de SRY en la gónada entre los 41 y 44 días posteriores a la fecundación: una ráfaga que dura solo unos pocos días (Hanley et al., Mechanisms of Development, 2000).
El gen SRY no construye nada por sí mismo. Aumenta la actividad de un segundo gen, SOX9, y este empuja a una población de células de soporte en la gónada a convertirse en células de Sertoli. Una vez que existen las células de Sertoli, el tejido se ha comprometido con una vía, y todo lo que sigue se deriva de lo que esas células y sus vecinas secretan a continuación. Esta es la parte que sorprende a la gente: la contribución directa del cromosoma es breve y limitada. Casi toda la anatomía se construye posteriormente, mediante hormonas, y por hormonas que, en principio, podrían provenir de cualquier fuente.
La contribución directa del cromosoma dura unos pocos días. Casi todas las estructuras posteriores son construidas por hormonas, razón por la cual el momento exacto de actuación de esas hormonas resulta tan crucial.
Primera señal: la hormona antimülleriana, la orden de demolición
La primera hormona en entrar en acción no es la testosterona. Desde aproximadamente la séptima semana, las células de Sertoli recién formadas comienzan a producir la hormona antimülleriana, habitualmente abreviada como AMH. Su función es inusualmente específica para una hormona: provoca la degradación de los conductos de Müller, un proceso que la investigación describe como prácticamente completado hacia la décima semana (Josso et al., Molecular and Cellular Endocrinology, 2001).
La AMH elimina la opción; no añade una estructura. Si la AMH está ausente o el tejido no puede responder a ella, los conductos de Müller permanecen, independientemente de lo que la testosterona esté haciendo en otra parte del mismo embrión. Las dos señales discurren por vías separadas, razón por la cual los biólogos del desarrollo las tratan como funciones independientes y no como dos aspectos de un único proceso.
Segunda señal: la testosterona, la orden de preservación
Hacia la octava semana, una segunda población celular en el testículo —las células de Leydig— comienza a producir testosterona. Las mediciones de los niveles hormonales en tejido fetal sitúan el pico máximo aproximadamente entre las semanas once y diecisiete, tras lo cual la producción disminuye durante el resto del embarazo (Reyes et al., Journal of Clinical Endocrinology & Metabolism, 1974).
La función de la testosterona en esta etapa es el reflejo inverso de la AMH: evita que los conductos de Wolff se degeneren y los impulsa a desarrollarse en el epidídimo, el conducto deferente y las vesículas seminales. Actúa a nivel local, a corta distancia, sobre el conducto adyacente al testículo que la produce. Sin embargo, la testosterona por sí sola hace muy poco en las estructuras externas. Para estas, el organismo realiza primero una conversión química.
Tercera señal: la DHT y por qué el cuerpo se toma la molestia de convertirla
Una enzima llamada 5-alfa reductasa tipo 2, presente en el tejido de los genitales externos en desarrollo, convierte la testosterona en dihidrotestosterona. La DHT se une al receptor de andrógenos con mayor fuerza y se disocia más lentamente que la testosterona, lo que la convierte en una señal más potente a la misma concentración (Grino, Griffin & Wilson, Endocrinology, 1990). El cuerpo no está elaborando un mensaje diferente: está creando uno con más volumen, en el lugar exacto donde se necesita.
Desde aproximadamente la semana nueve hasta la catorce, la DHT impulsa tres cambios a la vez. El tubérculo genital se alarga en lugar de permanecer compacto. Los pliegues urogenitales se fusionan a lo largo de la línea media, cerrándose para envolver la uretra a lo largo de la cara inferior del pene. Las eminencias labioescrotales se fusionan para formar el escroto. La DHT también estimula la formación de la próstata a partir del seno urogenital. La explicación clásica de esta división del trabajo —testosterona para los conductos internos, DHT para las estructuras externas y la próstata— fue planteada por Wilson, George y Griffin en Science en 1981 y sigue vigente desde entonces.
El crecimiento continúa una vez finalizado el trabajo estructural. La anatomía externa está esencialmente construida para la semana catorce; el tercer trimestre aporta tamaño, no partes nuevas.
Tabla 1. La secuencia por semana tras la fecundación
| Semana | Qué sucede | Señal responsable |
|---|---|---|
| 4–5 | Se forman las crestas genitales; la gónada es bipotencial | — |
| 6–7 | Ambos sistemas de conductos presentes; estructuras externas idénticas en todos los embriones | — |
| 6–7 | El gen SRY se activa brevemente; se forman las células de Sertoli | SRY → SOX9 |
| 7–10 | Los conductos de Müller se degeneran | Hormona antimülleriana |
| 8–14 | Los conductos de Wolff se preservan y desarrollan | Testosterona |
| 9–14 | El tubérculo se alarga; los pliegues y eminencias se fusionan; brota la próstata | DHT |
| 8–12 | En ausencia de AMH, los conductos de Müller se fusionan en el útero y la vagina superior | Vía WNT4 / RSPO1 |
| ~20 | El recuento de ovocitos en el ovario fetal alcanza su máximo histórico | — |
Las semanas se cuentan desde la fecundación, no desde la última menstruación. Los rangos son aproximados y varían según las fuentes publicadas.
La vía femenina no es la ausencia de la masculina
Durante la mayor parte del siglo XX, los libros de texto describieron el desarrollo femenino como lo que ocurre cuando no pasa nada: la vía «por defecto». Esa descripción no ha sobrevivido a los avances de la genética.
Los investigadores han identificado un conjunto de genes que construyen activamente el ovario y lo mantienen como tal. En 1999 se demostró que WNT4 es necesario para el desarrollo ovárico en mamíferos (Vainio et al., Nature). RSPO1 se añadió a la lista en 2006 (Parma et al., Nature Genetics). Lo más llamativo es FOXL2: un estudio de 2009 en Cell reportó que desactivar FOXL2 en el ovario de un ratón adulto provocaba que las células de soporte comenzaran a adquirir las características de las células testiculares (Uhlenhaut et al.). En otras palabras, mantener un ovario es una tarea continua y no una decisión tomada una sola vez y olvidada.
El tracto reproductor sigue el mismo principio. Sin AMH, los conductos de Müller persisten y sus porciones inferiores se fusionan a lo largo de la línea media, formando el útero y el cuello uterino, y la parte superior de la vagina se desarrolla a partir del mismo material; las secciones superiores no fusionadas permanecen como las trompas de Falopio (Robboy et al., Differentiation, 2017). Sin DHT, las estructuras externas conservan su disposición original: el tubérculo genital se convierte en el clítoris, los pliegues urogenitales permanecen separados como los labios menores y las eminencias labioescrotales permanecen separadas como los labios mayores. Nuestra guía sobre cada estructura con nombre de la anatomía externa femenina cubre el resultado adulto en detalle.
Mientras tanto, el ovario fetal realiza algo sin equivalente masculino. Un estudio clásico de recuento descubrió que la cantidad de ovocitos aumenta hasta un máximo vital de aproximadamente 6,8 millones hacia los cinco meses de gestación, para luego descender a unos dos millones al nacer (Baker, Proceedings of the Royal Society B, 1963). El pico se alcanza antes de que termine el embarazo y la cifra nunca vuelve a aumentar.
El papel de los estrógenos en todo esto es más limitado de lo que la mayoría de los lectores espera. El entorno fetal es rico en estrógenos procedentes de la placenta, pero los trabajos publicados indican que el tracto reproductor femenino no depende de la producción hormonal ovárica para formarse: el ovario fetal es comparativamente silencioso como órgano endocrino. La principal contribución estructural de los estrógenos llega más tarde, en la pubertad.
Ventanas críticas: por qué el momento oportuno supera a la cantidad
La idea menos explicada en toda esta secuencia es que varios de estos pasos solo tienen efecto durante un período estrecho. Si se pierde esa ventana, la señal no surte ningún efecto posterior, incluso con su máxima intensidad.
La evidencia más clara proviene de trabajos en animales sobre lo que los investigadores denominaron la «ventana de programación de la masculinización». Un estudio de 2008 en el Journal of Clinical Investigation descubrió que en ratas, la exposición a andrógenos ocurrida en una breve ventana específica —y no la exposición en el momento en que las estructuras crecían visiblemente— determinaba las dimensiones finales de la anatomía externa (Welsh et al.). Una revisión posterior estimó la ventana equivalente en humanos aproximadamente entre las semanas ocho y catorce (Dean & Sharpe, Journal of Clinical Endocrinology & Metabolism, 2013).
El marcador medible que utilizan los investigadores es la distancia anogenital, el espacio entre dos puntos anatómicos de referencia. Se establece durante esa ventana fetal, difiere de manera medible entre niños y niñas recién nacidos y no se modifica en respuesta a la exposición a andrógenos en etapas posteriores de la vida. Se ha convertido en un indicador estándar de investigación sobre cuánta señalización androgénica recibió el feto, precisamente porque es un registro permanente de un evento temporal.
La fusión de los pliegues urogenitales funciona del mismo modo. Una vez que la línea media se ha cerrado, permanece cerrada; una vez transcurrido el período de cierre, la exposición posterior a andrógenos no la reabre ni la completa. Las estructuras no se renegocian continuamente: se establecen y luego crecen.
Dónde la ciencia está consolidada y dónde no
Bien establecido: la secuencia y división del trabajo entre la AMH, la testosterona y la DHT; el origen compartido de cada estructura; la existencia de genes activos constructores del ovario.
Aún en investigación: los límites exactos de la ventana de programación humana, que se infieren a partir de modelos animales y mediciones indirectas en humanos en lugar de medirse directamente; y en qué medida la variación observada entre individuos se remonta en absoluto a este período.
La cascada se ejecuta por segunda vez, justo después del nacimiento
La mayoría de las personas asume que la maquinaria hormonal permanece inactiva desde el nacimiento hasta la pubertad. No es así. A los pocos días del parto, el eje que une el cerebro con las gónadas se reactiva. Las investigaciones sobre este período —comúnmente denominado minipubertad— señalan que la testosterona en los niños lactantes aumenta hasta niveles cercanos al rango adulto entre aproximadamente el primer y tercer mes, para luego descender hacia los seis meses, mientras que en las niñas lactantes los niveles hormonales fluctúan en valores elevados durante mucho más tiempo, en algunos estudios hasta los dos a cuatro años (Kuiri-Hänninen, Sankilampi & Dunkel, Hormone Research in Paediatrics, 2014).
Durante esta ventana se produce un crecimiento medible. Luego, el sistema entra en reposo durante aproximadamente una década, por razones que siguen siendo un área de investigación activa.
Pubertad: qué muestran realmente los rangos publicados
Los datos de referencia más citados provienen de un par de estudios longitudinales realizados en la década de 1960. El estudio de Marshall y Tanner sobre los cambios puberales en niñas, publicado en Archives of Disease in Childhood en 1969, fue seguido por un estudio complementario en niños en 1970. Ambos realizaron un seguimiento de los mismos niños a lo largo de los años en lugar de tomar muestras de diferentes niños en una sola ocasión, razón por la cual siguen siendo la base de esta disciplina.
Dos hallazgos merecen especial atención. El primero es la secuencia. En las niñas, el desarrollo mamario suele comenzar primero, seguido del vello púbico, el estirón de crecimiento y luego la primera menstruación (generalmente alrededor de dos a dos años y medio después del primer cambio mamario). En los niños, el aumento del tamaño testicular se produce en primer lugar, mucho antes de que algo sea visible desde el exterior, y el estirón de crecimiento llega comparativamente tarde en la secuencia en lugar de al principio.
El segundo es la dispersión. Los estudios reportan un rango de aproximadamente cuatro a cinco años entre el inicio más temprano y el más tardío dentro de la población estudiada, situándose todo ello dentro del rango medido. Investigaciones posteriores también han documentado una variación a lo largo del tiempo: una amplia encuesta en los Estados Unidos publicada en Pediatrics en 1997 reportó un inicio más temprano del desarrollo mamario en comparación con las cifras de la década de 1960 (Herman-Giddens et al.), y una revisión de expertos posterior concluyó que la evidencia de este cambio era más sólida para el inicio del desarrollo mamario que para la edad de la primera menstruación (Euling et al., Pediatrics, 2008).
Rangos de edad para los hitos puberales
Barras más oscuras: niñas · Barras más claras: niños. Las barras muestran la media ±2 desviaciones estándar según Marshall y Tanner (1969, 1970).
De esa dispersión se desprenden dos conclusiones: el inicio varía ampliamente entre individuos que se desarrollan dentro del rango estudiado, y la secuencia de acontecimientos es una característica más constante que la edad cronológica en la que se presenta cualquiera de ellos.
La anatomía continúa en constante cambio
El desarrollo suele presentarse como un proceso que finaliza al final de la adolescencia. Los datos a largo plazo sugieren lo contrario.
En los hombres, el Estudio Longitudinal de Baltimore sobre el Envejecimiento —que siguió a los mismos hombres a lo largo de décadas en lugar de comparar grupos de edad en un momento dado— reportó que la testosterona total disminuye aproximadamente un uno por ciento al año a partir de los treinta años, reduciéndose la testosterona libre con mayor rapidez (Harman et al., Journal of Clinical Endocrinology & Metabolism, 2001). Se ha documentado que el volumen testicular, normalmente en un rango de 12 a 25 mililitros en la edad adulta, disminuye con la edad (Mahmoud et al., 2003). El volumen de la próstata evoluciona en sentido contrario, aumentando de manera constante a lo largo de las décadas adultas (Berry et al., Journal of Urology, 1984).
En las mujeres, el cambio es más marcado y está fechado de forma más precisa. La producción de estrógenos disminuye notablemente alrededor de la menopausia, que ocurre a una edad media de unos 51 años. Un documento de consenso de 2014 de dos sociedades profesionales estableció la terminología estándar para los cambios tisulares documentados posteriores, incluida la reducción del grosor y la elasticidad de la pared vaginal (Portman & Gass, Menopause, 2014). Estos son cambios anatómicos documentados y no un tema sobre el cual este artículo pueda brindar asesoramiento. Cualquier persona que tenga dudas personales al respecto debe consultarlas con un profesional cualificado.
Vale la pena expresar este patrón con total claridad: los tejidos formados por hormonas antes del nacimiento continúan respondiendo a las hormonas durante toda la vida. Nada está verdaderamente concluido de forma definitiva.
Cuando la secuencia transcurre de forma diferente
Dado que las tres señales cumplen funciones distintas, pueden variar de manera independiente, y el estudio de esas variaciones fue precisamente el modo en que los investigadores descubrieron de qué era responsable cada señal en un principio.
El ejemplo más ilustrativo se describió en Science en 1974. Un equipo de investigación documentó una población en la que individuos con cromosomas XY producían testosterona con normalidad, pero presentaban una capacidad reducida para convertirla en DHT (Imperato-McGinley et al.). Las estructuras internas de Wolff, que dependen de la testosterona, se desarrollaron como se esperaba. Las estructuras externas, que dependen de la DHT, se desarrollaron de manera diferente. Ese contraste en una misma persona fue lo que demostró la división del trabajo descrita anteriormente en este artículo, y ningún experimento de laboratorio habría podido evidenciarlo con tanta claridad.
Las variaciones de este tipo se agrupan bajo el término de diferencias del desarrollo sexual (DDS). Constituyen un área bien estudiada de la biología del desarrollo y se mencionan aquí por lo que revelan sobre el mecanismo biológico. Asimismo, son enteramente independientes de las cuestiones de identidad de género, las cuales atañen a cómo una persona se percibe y comprende a sí misma, y no a cómo respondió un tejido a una señal hormonal en la décima semana de gestación. Confundir ambas cuestiones genera confusión en ambos sentidos.
¿Sabías que...?
La palabra glande proviene simplemente del latín para «bellota» (glans): la descripción que un anatomista romano hizo de una forma, adoptada íntegramente y nunca sustituida. Se aplica a la misma estructura en ambas anatomías, ya que en ambas se desarrolla a partir del mismo tubérculo genital. Nuestra entrada del glosario sobre el término rastrea su origen.
Preguntas de los lectores
Fuentes
- Sinclair AH et al. A gene from the human sex-determining region encodes a protein with homology to a conserved DNA-binding motif. Nature, 1990. doi:10.1038/346240a0
- Hanley NA et al. SRY, SOX9, and DAX1 expression patterns during human sex determination. Mechanisms of Development, 2000.
- Wilhelm D, Palmer S, Koopman P. Sex determination and gonadal development in mammals. Physiological Reviews, 2007.
- Josso N et al. Anti-Müllerian hormone: the Jost factor. Molecular and Cellular Endocrinology, 2001.
- Reyes FI et al. Studies on human sexual development: fetal gonadal and adrenal sex steroids. J Clin Endocrinol Metab, 1974.
- Wilson JD, George FW, Griffin JE. The hormonal control of sexual development. Science, 1981.
- Grino PB, Griffin JE, Wilson JD. Testosterone at high concentrations interacts with the human androgen receptor similarly to dihydrotestosterone. Endocrinology, 1990.
- Baskin L et al. Development of the human penis and clitoris. Differentiation, 2018.
- Vainio S et al. Female development in mammals is regulated by Wnt-4 signalling. Nature, 1999.
- Parma P et al. R-spondin1 is essential in sex determination. Nature Genetics, 2006.
- Uhlenhaut NH et al. Somatic sex reprogramming of adult ovaries to testes by FOXL2 ablation. Cell, 2009.
- Robboy SJ et al. Development of the human female reproductive tract. Differentiation, 2017.
- Baker TG. A quantitative and cytological study of germ cells in human ovaries. Proc R Soc Lond B, 1963.
- Welsh M et al. Identification in rats of a programming window for reproductive tract masculinization. J Clin Invest, 2008. doi:10.1172/JCI34241
- Dean A, Sharpe RM. Anogenital distance or digit length ratio as measures of fetal androgen exposure. J Clin Endocrinol Metab, 2013.
- Kuiri-Hänninen T, Sankilampi U, Dunkel L. Activation of the hypothalamic-pituitary-gonadal axis in infancy: minipuberty. Horm Res Paediatr, 2014.
- Marshall WA, Tanner JM. Variations in pattern of pubertal changes in girls. Arch Dis Child, 1969. doi:10.1136/adc.44.235.291
- Marshall WA, Tanner JM. Variations in the pattern of pubertal changes in boys. Arch Dis Child, 1970. doi:10.1136/adc.45.239.13
- Herman-Giddens ME et al. Secondary sexual characteristics and menses in young girls. Pediatrics, 1997.
- Euling SY et al. Examination of US puberty-timing data from 1940 to 1994. Pediatrics, 2008.
- Harman SM et al. Longitudinal effects of aging on serum total and free testosterone levels in healthy men. J Clin Endocrinol Metab, 2001.
- Berry SJ et al. The development of human benign prostatic hyperplasia with age. Journal of Urology, 1984.
- Portman DJ, Gass MLS. Genitourinary syndrome of menopause: new terminology. Menopause, 2014.
- Imperato-McGinley J et al. Steroid 5α-reductase deficiency in man. Science, 1974.
- Laqueur T. Making Sex: Body and Gender from the Greeks to Freud. Harvard University Press, 1990.
Este artículo es material de referencia educativa. No ofrece asesoramiento médico, evaluación ni orientación sobre el desarrollo individual.
Aviso legal
- Todo el contenido de este sitio web, incluidos los artículos, materiales educativos y calculadoras interactivas, tiene únicamente fines informativos, educativos y de entretenimiento. Los cálculos, percentiles y resultados generados por las herramientas de este sitio se basan en datos estadísticos generales y modelos matemáticos; no constituyen datos médicos, una evaluación clínica ni un diagnóstico.
- Nada de lo contenido en este sitio web sustituye el asesoramiento, diagnóstico o tratamiento médico profesional. Consulte siempre a un profesional de la salud cualificado o a un urólogo ante cualquier pregunta que tenga sobre el desarrollo físico, la anatomía o las condiciones de salud. El uso de cualquier información o herramienta proporcionada por este sitio web es exclusivamente bajo su propia responsabilidad.